問1:配列②。<span class="todo-flag">要確認</span>IREの領域Iは、mRNAの5′→3′で CAGUGC。これはDNAの鋳型でない側(コード鎖・配列①)と同じ配列(U→T)で、転写の向きと同じ向きに書かれた上側の鎖が配列①です。配列②は、それと塩基対をつくる鎖(鋳型鎖)です。
📌 このページの使い方
- 過去問集をお持ちの方:生物60分の配分で解き、答え一覧で採点してから解説へ
- お持ちでない方:各大問の「どういう問題か」を読めば、問題の中身がそのまま分かります
- 最後にそっくり類題セット(PDF版あり)を60分で解き、初見でも同じ解き方ができるか確かめる
※ 著作権に配慮し、入試問題の本文・図は掲載していません。図はTMPSが作成した解説用の図です。本番は理科2科目で120分・200点で、このページでは生物に60分を使う想定で時間配分を示しています。※ 用語・知識問題と、考察の記述(理由づけ)は、スクリプトでは確かめられないため「要確認」と示しています。
⚠️ 問題等で誤りを発見された場合、修正しますので、TMPS医学館までLINEを下さい。(迅速に確認・更新いたします)
LINEで誤りを連絡3分で分かる 2026年度の慈恵医大の生物
- ✅ 全3大問・理科2科目で120分。大問1が問1〜7、大問2が問1〜7、大問3が問1〜5。語句、記号選択、塩基配列、図へのバンドの書き込み、計算、そして「理由を説明せよ」の記述が混在します。
- ✅ 大問1は遺伝子の発現調節(鉄応答エレメントIREとIRP)と制限酵素の実験。mRNAのどの位置にIREがあるかで、翻訳が抑えられるか、mRNAが分解されるかが変わります。実験では、制限酵素の切断末端どうしが「つながるか」を読み解きます。
- ✅ 大問2は変異と味覚。前半は突然変異・遺伝子重複と苦味受容体の進化、後半は甘味受容体T1R3の遺伝子の−1266番の多型と、甘味の感じ方・好みの関係を、5つの実験から考察します。
- ✅ 大問3は植物の生殖と自家不和合性。胚のうと花粉の語句、アブラナ科とナス科のしくみの違い、リンゴの品種を使った遺伝の判断が出ます。
- ✅ 差がつくのは、実験結果の読み取りと、条件を整理して言い切る力。配列を決める問い、バンドを描く問い、遺伝の組合せは、手順どおりに進めれば確実に取れます。
Yuiちゃん
記述問題がたくさんあって、何を書けばいいか分からなくなります…。
Sora先生
まず「実験のどの結果を根拠にするか」を決める。そのうえで「だから○○が△△になる」と1文で言い切る。このページの答案例は、その型で書いてあるよ。Yuiちゃん
制限酵素の問題は、見ただけで難しそうです。Sora先生
突出末端が同じ同士だけがつながる、という1つのルールで全部説明できる。大問1の問3・問4は、ルールを当てはめるだけだよ。生物60分の立ち回りマップ
時間はTMPSの目安です。本番は理科2科目で120分なので、生物に60分を使う想定で配分しています。
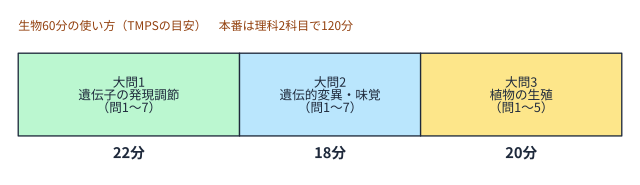
🧭 おすすめの解く順番
大問3 → 大問2 → 大問1(得意な順でも可)
大問3の語句と遺伝の問い、大問2の語句と計算(問5)は短時間で取れます。大問1は、実験の読み取りに時間がかかるので、最後にまとまった時間を確保します。
本番の答え一覧(採点用)
解説を読む前の採点用です。計算・配列・遺伝の問いはpythonで確かめ、語句・考察の問いは「要確認」として分けています。記述は答案例です。
大問1(遺伝子の発現調節)
問1 5′-GCACTG-3′問2 酵素β:DNAリガーゼ / 断片:岡崎フラグメント問3 断片#3の酵素3側の末端は,プラスミドの酵素2側の末端と突出が相補的でなく結合できないから(答案例は本文)問4 レーン6:2本。レーン3と同じ位置問5 #1:b / #4:a問6 #1:c / #4:a問7 フェリチン:翻訳が抑えられ,鉄を貯蔵しない。トランスフェリン受容体:mRNAが安定で受容体が増え,鉄の取り込みが増える
大問2(変異と味覚)
問1 ア 突然変異 / イ・ウ 酸味・塩味問2 紫外線など問3 遺伝子重複と突然変異の蓄積(答案例は本文)問4 食性・生息環境に応じた適応(答案例は本文)問5 80%問6 転写調節因子が発現している細胞だから問7 Tのプロモーター活性が低く,T1R3が少ないため(答案例は本文)
大問3(植物の生殖)
問1 A 核 / B 助 / C 雄原 / D 中央 / E 胞子 / F 前葉体問2 被子植物は花粉管で精細胞を運び,受精に水が不要。シダは精子が泳ぐので水が必要問3 ① キ / ② ク / ③ コ / ④ ケ / ⑤ コ / ⑥ コ問4 1) 北斗,アルプス乙女 / 2) 北斗は三倍体で花粉が不稔 / 3) S1S7:S1S9=1:1問5 1)・2) 本文 / 3) b,d
⚠️ 要確認(知識・考察問題):大問1 問2・問7、大問2 問1〜4・問6・問7、大問3 問1・問2・問4の2)・問5 は、用語や考察の表現に依存するため、スクリプトでは確かめられません。解答欄の形式は問題冊子で確かめてください。
※ 検算:問1の配列、制限酵素の切断末端の互換性と接合部の配列、図8のバンドの整合、問4のレーン、問5の頻度、大問3の表と品種の組合せは、pythonで確かめました。
採点したら → 30秒の得点診断へ大問1 遺伝子の発現調節 ── mRNA上のIREの位置で、何が変わるか
鉄の量に応じて、フェリチンとトランスフェリン受容体の遺伝子が逆向きに調節されるしくみを、外来遺伝子で確かめる実験が題材です。
現場戦略試験会場でのリアルな立ち回り(大問1)
⏱ 目標時間 & 死守ライン目標22分。問1・2・4を8分、問3を3分、問5〜7の説明を11分。
⚠️ 損切り・警戒ライン問5・問6の理由は、まず a〜d の記号だけ選ぶ。理由の文章は、時間が足りなければ「IREの位置→何に影響するか」の1文だけでも書く。
💡 初手の思考トリガーIREが翻訳領域の5′側 → 翻訳の抑制、3′側の制御領域 → mRNAの安定性。まずIREの位置を確認する。
📝 どういう問題か?
鉄は細胞に必須だが、遊離鉄は毒性をもつ。細胞は、フェリチン(貯蔵)とトランスフェリン受容体(取り込み)の遺伝子の発現を、mRNAの一部のIREと、IREに結合する鉄調節タンパク質IRPで調節する。IRPは鉄が結合するとIREに結合できない。これを、外来のタンパク質Aの遺伝子を使って確かめる実験が出る。
- 問1:IREの領域Iの保存配列(問題に示された図の6塩基)を使い、塩基対をつくる相補鎖「配列②」を5′→3′で答える(6マス)
- 問2:実験でDNA断片をつなぐ酵素βの名称と、複製で同じ酵素がつなぐDNA断片の名称
- 問3:3種類の断片のうち、断片#3だけがプラスミドにつながらなかった理由の説明
- 問4:産物#2を2種類の制限酵素と反応させたときの電気泳動の結果を、解答欄の図(レーン6)に書き込む
- 問5:IREをもつ2つのプラスミドで、0時とX時のmRNA量の変化を記号(a〜d)で選び、理由を説明
- 問6:同じ2つのプラスミドで、タンパク質Aの合成速度の変化を記号(a〜d)で選び、理由を説明
- 問7:遊離鉄濃度が極端に低いとき、フェリチンとトランスフェリン受容体の遺伝子がどう調節され、鉄不足がどう解消されるかの説明
$$\text{配列①}\ 5\prime\text{-CAGTGC-}3\prime\ \Rightarrow\ \text{相補鎖}\ 3\prime\text{-GTCACG-}5\prime\ =\ 5\prime\text{-GCACTG-}3\prime$$
相補的な塩基(A↔T,G↔C)に置きかえて、向きを逆にして5′→3′で読むのがポイントです。答えは 5′-GCACTG-3′。
問2:酵素と断片。<span class="todo-flag">要確認</span>切った断片をつなぐ酵素はDNAリガーゼ。複製では、ラギング鎖で不連続に合成される短い断片(岡崎フラグメント)をつなぎます。
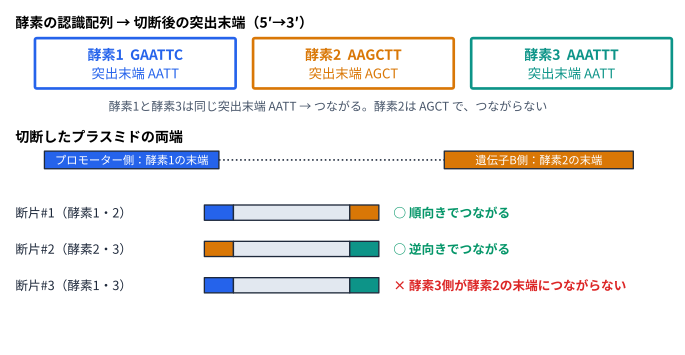
問3:断片#3がつながらない理由。各酵素は2本鎖の両鎖の「5′側の1塩基目と2塩基目の間」で切るので、突出末端(5′突出)は、認識配列の内側の4塩基になります。
$$\text{酵素1}\ \mathrm{G\,|\,AATTC}\to\mathrm{AATT},\quad \text{酵素2}\ \mathrm{A\,|\,AGCTT}\to\mathrm{AGCT},\quad \text{酵素3}\ \mathrm{A\,|\,AATTT}\to\mathrm{AATT}$$
切断したプラスミドの両端は、プロモーター側が酵素1の末端(AATT)、遺伝子A側が酵素2の末端(AGCT)。断片#3の両端は酵素1と酵素3で、どちらも突出は AATT です。酵素1側はプラスミドにつながっても、酵素3側の末端(AATT)は、プラスミドの酵素2側の末端(AGCT)と相補的でないため、つなぐことができません。一方、断片#1(酵素1・2)はそのまま、断片#2(酵素2・3)は逆向きにすると、両端がつながります。
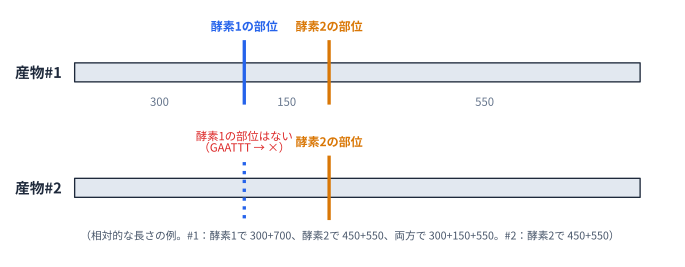
問4:レーン6。産物#2は、断片#2が逆向きで入ってできたプラスミドを鋳型にしたものです。プロモーター側の接合部は、プラスミドの酵素1の末端(G)と、断片の酵素3の末端(AATTT…)が結合して GAATTT になり、酵素1の認識配列 GAATTC は再生しません。遺伝子A側の接合部は酵素2どうしなので、AAGCTT が再生します。
したがって産物#2は、酵素1では切れず、酵素2だけで切れます。酵素2の部位の位置は産物#1と同じなので、酵素1と2の両方を加えたレーン6のバンドは、酵素2だけで切ったレーン3と同じ位置の2本です。
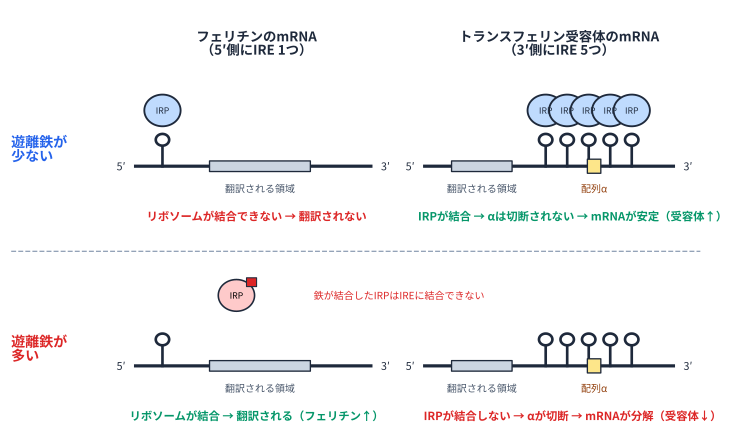
問5:mRNA量。実験3は「鉄なしで培養 → 転写を阻害(0時)→ 鉄を加えてIRPに鉄を結合させる(X時)」です。0時はIRPがIREに結合した状態、X時はIREからはずれた状態です。
プラスミド#1:IREは遺伝子Aの5′側にあり、IRPの結合はリボソームの結合(翻訳)にだけ影響します。mRNAの分解には関与しないので、mRNA量はb(変わらない)。プラスミド#4:0時は、IRPが3′側のIREに結合して配列αが切断されず、mRNAが安定です。X時はIRPがはずれ、配列αがRNA分解酵素αで切断されて、mRNAが分解されるのでa(減っている)。
問6:タンパク質Aの合成速度。#1:0時はIRPがIREに結合してリボソームが結合できず翻訳が抑えられ、X時はIRPがはずれて翻訳が進むのでc(増加している)。#4:X時にmRNAが減るので合成速度はa(低下している)(3′側に結合するIRPは翻訳には影響しません)。
問7:遊離鉄が極端に少ないとき。<span class="todo-flag">要確認</span>IRPはIREに結合しています。フェリチンmRNA(5′側のIRE)は、翻訳が抑えられて、鉄を貯蔵するフェリチンが作られません。トランスフェリン受容体mRNA(3′側の5つのIRE)は、配列αが切断されずmRNAが安定になり、受容体が多く作られて、鉄の取り込みが増えます。この2つで、細胞内の遊離鉄の不足が解消されます。
🎯 大問1の答え
問1:5′-GCACTG-3′問2:DNAリガーゼ,岡崎フラグメント問3:断片#3の酵素3側の末端(AATT)が,プラスミドの酵素2側の末端(AGCT)と相補的でなく,つながらないから。問4:レーン3と同じ位置の2本問5:#1 b,#4 a問6:#1 c,#4 a問7:フェリチンは翻訳抑制,受容体はmRNAが安定化 → 取り込み増加で鉄不足が解消
⚠️ 問1は、「向きを逆にする」のを忘れて GTCACG と書かない。問4は、産物#2に酵素1の部位がないことに気づく(接合部が GAATTC にならない)のが最大のポイント。問5・問6は、「IREの位置」でmRNA量とタンパク質合成を分けて考える。
Yuiちゃん
問4で、どうして産物#2は酵素1で切れないんですか?Sora先生
断片#2は逆向きに入ったよね。そのとき、プラスミド側の酵素1の末端と、断片側の酵素3の末端がつながる。突出は同じ AATT でつながるけど、できた配列は GAATTT。酵素1が認識するのは GAATTC だから、もう切れないんだ。Sora先生の総整理表
大問1:発現調節の型
| 小問 | やること | 着眼点 |
|---|---|---|
| 問1 | 相補鎖を5′→3′で書く | 置きかえてから向きを逆にする |
| 問3・4 | 突出末端が同じ同士だけがつながる | 接合部の配列が認識配列にもどるかを確認 |
| 問5 | IREの位置を見る | 5′側→翻訳、3′側→mRNAの安定性 |
| 問6 | mRNA量→合成速度の順に考える | mRNAが減れば、合成速度も下がる |
TMPSコーチング診断
🩺【自己診断】大問1で手が止まった人への処方箋
- 問1配列が逆になる → 置きかえ(A↔T,G↔C)してから、向きを逆に読む
- 問3・4つながる条件が分からない → 各酵素の突出末端(5′突出4塩基)を書き出して比べる
- 問5・6記号が選べない → 図Bのように、IREの位置とIRPの結合の有無を4つの場合に分けて書く
大問2 遺伝的変異と味覚受容体 ── 語句と、実験から読み取る考察
前半(I)は突然変異・遺伝子重複と苦味受容体の進化、後半(II)は甘味受容体の遺伝子の多型と甘味の感じ方・好みの関係です。
現場戦略試験会場でのリアルな立ち回り(大問2)
⏱ 目標時間 & 死守ライン目標18分。I(問1〜4)を6分、II(問5〜7)を12分。
⚠️ 損切り・警戒ライン問3・問4の考察は、キーワード(遺伝子重複・突然変異の蓄積・自然選択)を並べて1文にして切り上げる。
💡 初手の思考トリガー問5は表1の合計から遺伝子の数で数える(人数ではなく、遺伝子の数)。
📝 どういう問題か?
前半は生物の変異と味覚の語句・考察。後半は、甘味受容体の遺伝子T1R3のプロモーター・調節領域にある−1266の塩基の多型(CまたはT)を題材に、300人の甘味感受性の分布、遺伝子型との関係、ルシフェラーゼによるプロモーター活性の測定、好みのスクロース濃度の5つの実験を読み解く。
- I 問1:空欄ア〜ウ(ア:遺伝的変異の原因、イ・ウ:5つの味覚のうちの2つで順不同)に入る語句
- I 問2:下線部(a)「ある種の環境因子」の具体例を1つ
- I 問3:ヒトに約25種類ある苦味受容体の遺伝子が、どのような過程で生じたかの考察
- I 問4:苦味受容体の遺伝子の種類や数が種によって異なることを、適応進化としてどう説明するか
- II 問5:実験3の表1から、−1266がCである遺伝子の割合(%、四捨五入して整数)
- II 問6:実験4で、T1R3遺伝子を発現している細胞を用いる理由
- II 問7:実験5から、−1266Tをもつ人が好むスクロース濃度が高くなる理由を、一連の実験結果から考察
I 問1:語句。<span class="todo-flag">要確認</span>ア:突然変異(遺伝する変異はDNAの塩基配列の変化で生じる)。イ・ウ:酸味・塩味(ヒトの味覚の5種類は、甘味・うま味・苦味・酸味・塩味)。
問2:<span class="todo-flag">要確認</span>突然変異の発生率を高める環境因子の例は、紫外線(ほかに放射線、化学物質)。
問3:<span class="todo-flag">要確認</span>答案例:ある祖先遺伝子が重複して複数のコピーになり、それぞれに突然変異が蓄積して、異なる苦味物質を受容する塩基配列(アミノ酸配列)の多数のT2R遺伝子ができた。アミノ酸配列・塩基配列に類似性があるのは、もとが共通の遺伝子だからです。
問4:<span class="todo-flag">要確認</span>答案例:種によって食べる物や生息環境が異なり、危険な物質を識別するのに必要な受容体の種類が異なる。識別に有利な遺伝子をもつ個体が自然選択で残り、数や種類が変化した。
II 問5:表1の合計は、CC=191人、CT=96人、TT=13人(計300人)。C遺伝子の数は、CCが2個ずつ、CTが1個ずつなので、
$$\frac{2\times191+96}{2\times300}\times100=\frac{478}{600}\times100=79.7\ldots\ \Rightarrow\ \boxed{80\ \%}$$
(人数ではなく遺伝子の数で数えます。TT 13人は C をもたず、CT 96人は C を1つだけもちます。)
問6:<span class="todo-flag">要確認</span>答案例:プロモーター・調節領域に結合して転写を調節する転写調節因子は、その遺伝子を発現している細胞にあるから。発現していない細胞では、必要な因子がなく、領域の活性を比べられない。
問7:<span class="todo-flag">要確認</span>実験の結果を順に使います。実験4:−1266Tのプロモーター・調節領域は、−1266Cより発光量が小さい(約5:約7)。つまり、T型は転写活性が低く、T1R3の発現量が少ない。実験3:TTをもつ人は感受性の低い群に偏り、CCは高い群に多い。実験5:TT>CT>CCの順に、好むスクロース濃度が高い(19.4>16.2>10.2)。
答案例:−1266Tは、T1R3遺伝子の転写活性が低く(実験4)、甘味受容体T1R2/T1R3が少なくなって甘味の感受性が低い(実験3)。そのため、同じ甘さを感じるために、より高濃度のスクロースを好むようになる。
🎯 大問2の答え
I 問1:ア 突然変異,イ・ウ 酸味・塩味I 問2:紫外線I 問3:遺伝子重複+突然変異の蓄積I 問4:食性・生息環境に応じた自然選択II 問5:80%II 問6:転写調節因子が,発現している細胞にあるからII 問7:Tはプロモーター活性が低く受容体が少ない → 感受性が低く,高濃度を好む
⚠️ 問5は、人数ではなく遺伝子の数で割る。分母は 300 ではなく 600。問7は、実験4(発光量)→実験3(感受性)→実験5(好み)の順に、「だから」でつなぐ。
Yuiちゃん
問5で、CTの人は1人を1と数えてはいけないんですか?Sora先生
うん。CTの人は C を1つ、T を1つもつ。遺伝子の割合だから、1人あたり2個で数える。CCは2個、CTは1個、TTは0個、と数えて、全体の600個で割るよ。Sora先生の総整理表
大問2:変異と実験の読み方
| 小問 | やること | 着眼点 |
|---|---|---|
| 問3 | 遺伝子重複 → 突然変異の蓄積 | 類似性は共通の祖先遺伝子から |
| 問5 | 遺伝子の数で割合を出す | 2×CC+CT ÷ 2×全人数 |
| 問6 | 転写調節因子の有無 | 発現している細胞にそろっている |
| 問7 | 実験4→3→5の順につなぐ | 活性→発現量→感受性→好み |
TMPSコーチング診断
🩺【自己診断】大問2で手が止まった人への処方箋
- 問3・4何を書くか分からない → 「遺伝子重複」「突然変異」「自然選択」の3語を先に書き、順に文でつなぐ
- 問580にならない → 人数でなく遺伝子の数。分母は人数×2
- 問7根拠が足りない → 実験4(発光量)、実験3(感受性)、実験5(好み)の3つをそろえる
大問3 植物の生殖 ── 語句、表の空欄、リンゴの品種の組合せ
語句の補充、アブラナ科とナス科のS因子のしくみの整理、リンゴの品種の遺伝子型を使った結実の判断、近縁種を使った交配実験の考察が出ます。
現場戦略試験会場でのリアルな立ち回り(大問3)
⏱ 目標時間 & 死守ライン目標20分。I(問1・2)を6分、II(問3〜5)を14分。
⚠️ 損切り・警戒ライン問4・問5は、S因子のルール(花粉自身がS因子を作る/めしべに同じS因子があると止まる)を先にメモしてから、全列挙で。
💡 初手の思考トリガー花粉(n)はS遺伝子を1つだけもつ。めしべ(2n)のS因子は、2つの遺伝子から等しく作られる。
📝 どういう問題か?
前半は、被子植物の花粉と胚のうの形成・重複受精と、シダ植物の生活環の語句。後半は、自家不和合性のしくみ(花粉側とめしべ側のS遺伝子の型が同じなら自己と認識)を、表の整理、リンゴの品種の組合せ、近縁種との交配実験の3つの形で問う。
- I 問1:空欄A〜F(被子植物の胚のう形成と受精、シダ植物の配偶体)の語句
- I 問2:被子植物の方がシダ植物より陸上生活に適している理由を、生殖のしくみから考察
- II 問3:表1(アブラナ科とナス科のS遺伝子型・S因子の種類)の空欄①〜⑥に、選択肢(ア〜サ)から記号を入れる
- II 問4:表2(リンゴの品種とS遺伝子型)を使って、1)花粉で結実しない品種を選ぶ、2)理由の考察、3)胚のS遺伝子型とその比
- II 問5:近縁種との交配実験1〜4について、1)2)結果の理由、3)考察のa〜dから正しいものをすべて選び、理由を述べる
I 問1:語句。<span class="todo-flag">要確認</span>胚のう細胞は核分裂を3回くり返して8個の核をもつ胚のうになる(A)。花粉管は胚のう内の助細胞(B)が出す誘引物質に導かれる。雄原細胞(C)が分裂して2個の精細胞になり、1個は卵細胞と受精、もう1個は中央細胞(D)と融合して胚乳となる。シダ植物は減数分裂で胞子(E)を作り、胞子は発芽して前葉体(F)になる。
問2:<span class="todo-flag">要確認</span>答案例:シダ植物は精子が水中を泳いで卵に達するので受精に水が必要で、前葉体も湿った環境でしか生活できない。被子植物は花粉管で精細胞を卵細胞まで運ぶので、水がなくても受精でき、乾燥した陸上でも生殖できる。
問3:表の空欄。アブラナ科では、花粉のS因子は花粉をとりまく2nの細胞が作るので、花粉の表面に2種類のS因子が分布します。ナス科では、花粉自身(n)が作るので、1つの花粉に1種類です。めしべのS因子は、めしべの細胞(2n)の2つのS遺伝子から等しく作られるので2種類です。
表1の整理
各空欄の考え方
| 空欄 | 答え | 理由 |
|---|---|---|
| ① アブラナの花粉の細胞のS遺伝子型 | (キ)S1またはS2 | 花粉は減数分裂でできた n の細胞 |
| ② ナスの花粉の細胞のS遺伝子型 | (ク)S3またはS4 | 花粉は n のためS遺伝子を1つだけもつ |
| ③ 花粉の表面のS因子(アブラナ) | (コ)2種類 | 2nの細胞が作るので両方が分布 |
| ④ 花粉内のS因子(ナス) | (ケ)1種類 | 花粉自身(n)が作る |
| ⑤ めしべのS因子(アブラナ) | (コ)2種類 | S1・S2 の両方 |
| ⑥ めしべのS因子(ナス) | (コ)2種類 | S3・S4 の両方 |
問4:リンゴ。花粉自身がS因子を作る配偶体型です。花粉管は、めしべに同じS因子があると伸びが抑制されます。花粉のS因子は、そのリンゴの2つのS遺伝子のどちらか(1:1)です。
1) ふじ(S1S9)の花粉は S1 または S9。結実しないのは、めしべにS1とS9の両方がある品種。S1S9のアルプス乙女と、S1S7S9(三倍体)の北斗が該当します(ふじ自身は「異なる品種」ではないので除く)。
2) <span class="todo-flag">要確認</span>千秋(S1S7)の花粉の S1・S7 は、ゴールデンデリシャス(S2S3)のめしべのS因子とは異なるので伸び、結実します。一方、北斗(S1S7S9)の花粉は、S因子の型では、S2S3と同じものがありません。それでも結実しなかったのは、北斗が三倍体で、減数分裂で染色体が正しく分配されず、正常な花粉ができない(花粉が不稔になる)ためと考えられます。
3) シナノスイート(S1S7)の花粉は S1 または S7。紅玉(S7S9)のめしべにはS7があるので、S7の花粉は止まり、S1の花粉だけが受精します。卵細胞は S7 または S9(1:1)。
$$\text{胚}:\ \mathrm{S1S7}:\mathrm{S1S9}=1:1$$
問5:近縁種との交配実験。<span class="todo-flag">要確認</span>1) 実験1:めしべ側のS遺伝子が機能を欠損している柱頭にハクサンハタザオの花粉をつけた。花粉側のS因子とめしべ側のS因子が同じ型でも、めしべ側が機能しないので、花粉が自己と識別されず、花粉管は伸びる。2) 実験2:めしべ側は正常(ハクサンハタザオ型)だが、花粉のS遺伝子型が異なるので非自己と識別され、抑制されない。
3) 答えは b、d。実験3(同じ型の花粉)と実験4(逆位を戻した花粉)で、型が一致すると花粉管が伸びなかったので、b:型が一致すれば、異種の個体間でも自家不和合性のしくみが働くが言えます。実験4は、花粉側の逆位を元に戻すと再び不和合になることを示すので、d:S遺伝子の変異を元にもどすと、再び自家不和合性の個体にできるも言えます。a(雑種が不可能)は、実験1・2で花粉管が伸びているので言えず、c(めしべ側の変異で自殖種になった)は、③より花粉側の機能欠損がすべての系統に共通しているので、めしべ側の変異が原因だとは導けません。
🎯 大問3の答え
問1:A 核,B 助,C 雄原,D 中央,E 胞子,F 前葉体問2:シダは精子が泳ぐので水が必要。被子植物は花粉管で水がなくても受精問3:① キ,② ク,③ コ,④ ケ,⑤ コ,⑥ コ問4:1) 北斗,アルプス乙女,2) 北斗は三倍体で花粉が不稔,3) S1S7:S1S9=1:1問5:1) めしべ側が機能を欠損,2) 非自己と識別,3) b,d
⚠️ 問3は、花粉はn、めしべは2nで数える。問4の1)は、花粉のS因子のどちらも止められる品種だけが「結実しない」。片方だけなら、残りの花粉で結実する。三倍体(北斗)は表を見落としやすい。
Yuiちゃん
問4の1)で、S1S9の品種だけでなくて、北斗も入るのはなぜですか?Sora先生
北斗は S1S7S9 の三倍体。めしべに S1 も S9 もあるから、ふじの花粉(S1 か S9)はどちらも止められてしまう。表の遺伝子型を数え間違えないのがコツだよ。Sora先生の総整理表
大問3:S因子の型
| 小問 | やること | 着眼点 |
|---|---|---|
| 問3 | 花粉は n、めしべは 2n で数える | アブラナ科=2nの細胞が作る/ナス科=花粉自身 |
| 問4 | 花粉のS因子 vs めしべのS因子 | 同じS因子があれば止まる。両方止まれば不結実 |
| 問5 | 花粉側/めしべ側のどちらの機能かを分ける | 実験3・4で型の一致 → 不和合 |
TMPSコーチング診断
🩺【自己診断】大問3で手が止まった人への処方箋
- 問1語句が出ない → 胚のう(核・助・中央)と花粉(雄原・精細胞)の順に図を描く
- 問3S因子の数が分からない → 誰が作るか(2nの細胞か、花粉自身か)を先に書く
- 問4結実の判断が曖昧 → 花粉のS因子(1か2か3つ)とめしべのS因子を並べて、全列挙
TMPS ORIGINAL
慈恵医大2026型 そっくり類題セット
慈恵医大2026型 そっくり類題セット
(全3大問・解答解説つき)
2026年度の本番と同じ3大問(問1〜7、問1〜7、問1〜5)・同じ型で、題材と数値を変えたTMPSオリジナル問題です。制限酵素とゲルの読み取り、mRNAの調節の考察、遺伝子型頻度の計算、自家不和合性の組合せ、実験結果から理由を述べる記述を一通り練習できます。
試験時間の目安 60分発現調節と制限酵素・変異と乳糖分解酵素・自家不和合性
📄 本番形式の問題冊子PDFをダウンロード(全11ページ)
印刷して、本番と同じように60分で解けます(本番は理科2科目で120分)。解答・解説はこのページの下に掲載しています。
※ 東京慈恵会医科大学の入試問題ではありません。本文・設問・人物・団体(架空)はすべてTMPS医学館が作成したオリジナルで、出典のある引用ではありません。
類題 大問1 遺伝子の発現調節(亜鉛応答エレメント)
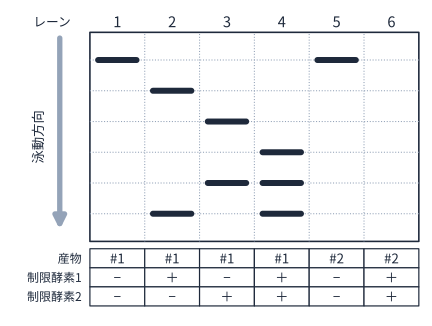
図1 産物#1・#2の電気泳動(TMPS作成。レーン6が解答欄)
- 核酸塩基のアデニン,チミン,グアニン,シトシン,ウラシルは,それぞれ A,T,G,C,U で表す。
- この問題に出てくる遺伝子・タンパク質・調節機構のうち,大問1の「亜鉛応答エレメント」と「亜鉛調節タンパク質」は,この問題のために設定した架空のものである。
遺伝子の発現調節に関する各問いに答えよ。
亜鉛は,多くの酵素の働きに必要な金属である。細胞膜には亜鉛輸送体が存在し,細胞外の亜鉛を細胞内に取り込む。細胞内の余剰の遊離亜鉛は,亜鉛貯蔵タンパク質に取り込まれて貯蔵される。
過剰な遊離亜鉛は細胞毒性を示すため,亜鉛貯蔵タンパク質遺伝子と亜鉛輸送体遺伝子の発現が調節されて,細胞内の遊離亜鉛の量は調整されている。この発現調節には,これらのmRNAの一部で形成される亜鉛応答エレメント(ZRE)と,ZREに結合する亜鉛調節タンパク質(ZBP)が共通して関与する。ZBPは亜鉛と結合する性質をもち,亜鉛と結合した状態ではZREと結合できない。すなわち,細胞内の遊離亜鉛濃度に応じて,ZBPとZREの結合状態は変化する。
亜鉛貯蔵タンパク質のmRNAは,タンパク質に翻訳される塩基配列よりも5′末端側にZREを1つもつ。ZREにZBPが結合した状態では,リボソームはmRNAに結合できない。亜鉛輸送体のmRNAは,タンパク質に翻訳される塩基配列よりも3′末端側に3つのZREをもち,それらの間にあるRNA分解酵素γで切断される塩基配列(配列γ)とともに制御領域を形成する。配列γが切断されると,mRNA全体は直ちに分解される。この制御領域のZREにZBPが結合していると配列γは切断されない。また,3′末端側に結合するZBPは翻訳には影響を与えない。ZREだけでは,どの位置に存在しても翻訳には影響を与えない。
ZREは,mRNA上で,領域II,領域I,領域II′がこの順に並んだ部分から形成される。領域IIと領域II′は互いに相補的な塩基配列で,対になって立体構造をつくる。領域Iは種を超えて保存された6塩基の配列で,5′→3′方向に CUGACA である。
ZBPとZREによる調節機構は,外来の遺伝子に対しても機能させることができる。これを確認するために,以下の実験を行った。
<実験1>
(実験1-1)外来のタンパク質Bの遺伝子(遺伝子B)が組み込まれた発現用のプラスミド(発現プラスミド)を制限酵素1および2と反応させ,プロモーターと遺伝子Bの間の2カ所で切断した。制限酵素の認識配列と切断のしかたは,次のとおりである。制限酵素1〜3の認識配列は,それぞれ 5′-GGATCC-3′,5′-ACTAGT-3′,5′-TGATCA-3′ で,いずれも2本鎖の両鎖において5′側の1塩基目と2塩基目の間で切断される。切断された発現プラスミドの,プロモーター側の末端は酵素1,遺伝子B側の末端は酵素2による切断末端である。
(実験1-2)以下に示す3種類のDNA断片(断片#1,#2,#3)を作製した。いずれも同じ長さである。
断片#1:両端に制限酵素1と2による切断後にあらわれる塩基配列(切断配列)をもち,ZREに転写される配列を含むDNA断片。その中央部で,領域Iに転写される配列を含む部分の2本鎖を,次のように呼ぶ。上側の鎖(5′→3′が左から右で,転写の向きと同じ)の塩基配列が 5′-CTGACA-3′ で,これを配列①とする。これと塩基対をつくる下側の鎖の配列を配列②とする。
断片#2:両端に制限酵素2と3による切断配列をもち,ZREとして機能しない塩基配列をもつDNA断片。
断片#3:両端に制限酵素1と3による切断配列をもち,ZREとして機能しない塩基配列をもつDNA断片。
制限酵素1〜3の認識配列は,断片#1〜#3の内部には存在しない。
(実験1-3)(実験1-1)で切断したプラスミドと,(実験1-2)の3種類のDNA断片をそれぞれ混ぜた後,酵素δを加え反応させた。これにより,断片#1と断片#2はそれぞれプラスミドの切断部と両端がつながり,断片#1が発現プラスミドに挿入されたプラスミド#1,断片#2が発現プラスミドに挿入されたプラスミド#2が形成された。しかし,断片#3だけは発現プラスミドにつなぐことができなかった。なお,プラスミド#1,#2においてDNA断片が挿入された場所は,ZREが遺伝子Bの発現を調節できる位置である。
(実験1-4)以下のようなプラスミド#4も作製した。
プラスミド#4:遺伝子Bの3′末端側に,亜鉛輸送体の制御領域の塩基配列を発現調節が行えるように組み込んだもの。
問1 配列②に入る塩基配列を5′→3′方向で答えよ。解答欄の1マスに,核酸塩基を表すアルファベットで1文字ずつ記入すること。
問2 (実験1-3)で使用した酵素δの名称を答えよ。また,同じ名称の酵素は,多くの生物においてDNAの複製で使用されている。この酵素が複製でつないでいるDNA断片の名称を答えよ。
問3 (実験1-3)で断片#3をつなぐことができなかった理由を説明せよ。
<実験2>
プラスミド#1と#2のそれぞれを鋳型DNAとし,挿入したDNA断片を含む領域を,プライマーを用いたPCR法で増幅した。増幅してきたPCR産物をそれぞれ産物#1および産物#2とする。産物#1を制限酵素と反応させ,アガロース(寒天)ゲルで電気泳動を行い,DNAのバンドを確認した。その結果を図1のレーン2〜4に示す。使用した制限酵素は図1の表(使用した場合は+,使用していない場合は-)のとおりである。図1のレーン1と5には,制限酵素と反応させていない産物#1と#2を電気泳動している。
問4 実験2と同じ条件で,産物#2を制限酵素1と2の両方と同時に反応させて電気泳動した時,どのような結果になるか,解答欄の図のレーン6にDNAのバンドを書き込め。なお,バンドの太さは考慮しなくてよい。
<実験3>
プラスミド#1,#2,#4のいずれかを,ZBPとRNA分解酵素γが発現している細胞に導入し,その後,亜鉛を含まない培養液中で培養した。十分に培養した後,薬剤を加えて転写を阻害した。この時間を0時とする。培養液に細胞毒性が生じない量の亜鉛を加え,細胞内のZBPに亜鉛が十分結合するX時まで培養し,遺伝子Bの発現量を調べた。なお,この細胞内の亜鉛濃度は,培養液中の亜鉛濃度を速やかに反映する。
問5 実験3において,プラスミド#2を導入した細胞で,0時とX時での遺伝子BのmRNAの存在量を比較すると,変化はなかった。プラスミド#1またはプラスミド#4を導入したそれぞれの細胞で,X時での遺伝子BのmRNAの存在量は,0時と比べてどのようになっているか,次のa〜dより選び,記号で答えよ。また,そのようになる理由を説明せよ。
(a) 減っている(b) 変わらない(c) 増えている(d) 減っている場合と増えている場合がある
問6 実験3において,プラスミド#2を導入した細胞で,0時とX時でのタンパク質Bの合成速度を比較すると,変化はなかった。プラスミド#1またはプラスミド#4を導入したそれぞれの細胞で,X時でのタンパク質Bの合成速度は,0時と比べてどのようになっているか,次のa〜dより選び,記号で答えよ。また,そのようになる理由を説明せよ。
(a) 低下している(b) 変わらない(c) 増加している(d) 低下している場合と増加している場合がある
問7 哺乳類の生体内において,細胞内の遊離亜鉛濃度が極端に高い時,亜鉛貯蔵タンパク質と亜鉛輸送体のそれぞれの遺伝子がどのように発現調節を受けているかを説明し,それにより細胞内の遊離亜鉛過剰がどのように解消されているかを述べよ。
▶ 大問1 の答えと解説を見る
大問1 遺伝子の発現調節(亜鉛応答エレメント) の答えと解説
問1
5′-TGTCAG-3′
- 配列①(5′-CTGACA-3′)と塩基対をつくる鎖は,各塩基を相補的な塩基に置きかえ(A↔T,G↔C),向きを逆にして読む。
- 相補鎖を3′→5′で書くと GACTGT。これを5′→3′にそろえると TGTCAG。
- 確かめ:TGTCAG の相補鎖を向きを逆にして読むと CTGACA にもどる。
問2
酵素δ:DNAリガーゼDNA断片:岡崎フラグメント
- 切断した断片の末端どうしを,ヌクレオチド間のリン酸ジエステル結合でつなぐ酵素は DNAリガーゼ。
- 複製では,ラギング鎖で不連続に合成された短いDNA断片(岡崎フラグメント)をつなぐ。
- 知識問題。
問3
断片#3の酵素3側の末端の突出(GATC)は,プラスミドの遺伝子B側の末端(酵素2による切断末端,突出CTAG)と相補的でなく,結合できないから。
- 酵素1の認識配列 GGATCC を切断すると,突出末端は 5′-GATC。酵素3の認識配列 TGATCA を切断しても突出末端は 5′-GATC。つまり,酵素1と酵素3の切断末端は互いにつながる(粘着末端が同じ)。
- 一方,酵素2の認識配列 ACTAGT の切断では突出末端は 5′-CTAG で,GATC とは相補的でない。
- プラスミドの両端は「酵素1の末端」と「酵素2の末端」。断片#3は両端とも突出が GATC なので,片方(酵素1側)はつながっても,もう一方が酵素2の末端につながれず,環状にならない。
問4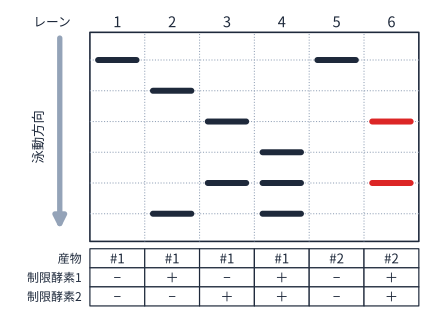
解答図:レーン6(TMPS作成)
レーン6:2本のバンド。レーン3(酵素2のみ)と同じ2か所に現れる。
- 産物#2は,断片#2が「逆向き」に挿入されてできた。プロモーター側の接合部は GGATCA(酵素1の末端 G + 酵素3の末端 GATCA)となり,酵素1の認識配列 GGATCC は再生しない。
- 遺伝子B側の接合部は 酵素2の末端どうしで ACTAGT となり,酵素2の認識配列は再生する。よって産物#2は酵素1では切れず,酵素2だけで切れる。
- 酵素2の部位の位置は産物#1と同じなので,酵素1と2を両方加えても,レーン3と同じ2本(長いほう・短いほう)になる。
問5
プラスミド#1:bプラスミド#4:a
- #1:ZREは遺伝子Bの5′側にあり,ZBPの結合は翻訳(リボソームの結合)にだけ影響する。mRNAの分解には関与しないので,mRNA量は変わらない。
- #4:0時は亜鉛がなく,ZBPが3′側のZREに結合して配列γを守っているのでmRNAは分解されない。X時は亜鉛がZBPに結合してZREに結合できなくなり,配列γがRNA分解酵素γで切断され,mRNAが分解されて減る。
問6
プラスミド#1:cプラスミド#4:a
- #1:0時はZBPがZREに結合し,リボソームがmRNAに結合できず翻訳が抑えられている。X時は亜鉛がZBPに結合してZREからはずれ,リボソームが結合できるようになるので,合成速度は増加する。
- #4:X時にmRNAが分解されて減るため,タンパク質Bの合成速度は低下する(3′側のZBPは翻訳には影響しない)。
問7
貯蔵タンパク質:ZBPがZREからはずれ,翻訳が進み貯蔵タンパク質が増加。輸送体:ZBPがZREからはずれ,配列γが切断されてmRNAが分解され,輸送体が減少。→亜鉛の取り込みが減り,貯蔵が増えて,遊離亜鉛が減る。
- 遊離亜鉛が多いと,ZBPに亜鉛が結合し,ZBPはZREに結合できない。
- 亜鉛貯蔵タンパク質のmRNA(5′側にZRE):リボソームが結合でき,翻訳が進んで貯蔵タンパク質が増加 → 余剰の遊離亜鉛が貯蔵される。
- 亜鉛輸送体のmRNA(3′側に3つのZRE):配列γが切断されてmRNAが分解され,輸送体が減少 → 細胞内への亜鉛の取り込みが減る。
- この2つで,遊離亜鉛の過剰が解消される。
類題 大問2 遺伝的変異(嗅覚受容体・乳糖分解酵素)
遺伝的変異と嗅覚・乳糖分解酵素に関する各問いに答えよ。
I.生物の個体間には,たとえ同じ種であっても形質に違いがある。これを変異という。変異には,遺伝する変異(遺伝的変異)と遺伝しない変異(環境変異)がある。遺伝的変異はアによって生じ,ある種の環境因子はアの発生率を増加させる。$^{(a)}$ 遺伝的変異が,長い年月をかけ自然選択を受け,生存や繁殖に有利な形質をもつ子孫が増えることで,生物は進化する。
においの受容は,鼻の奥のイにある嗅細胞の繊毛で,においの分子が嗅覚受容体と結合することで始まる。嗅覚受容体は,7回膜貫通型のウ共役型受容体であり,においの分子の種類ごとに異なる嗅覚受容体が存在する。ヒトでは約400種類の嗅覚受容体の遺伝子(以下,嗅覚受容体遺伝子と略す)がゲノムに存在している。$^{(b)}$ それぞれの嗅覚受容体のアミノ酸配列や嗅覚受容体遺伝子の塩基配列には,類似性(相同性)が認められる。嗅覚受容体遺伝子の種類や数は,種によって異なっていることが知られており,これは適応進化によるものと考えられている。$^{(c)}$
問1 ア〜ウに入る適切な語句を答えよ。
問2 下線部(a)の環境因子の具体例をひとつあげよ。
問3 下線部(b)で述べられている多種類の嗅覚受容体遺伝子はアによって生じたと考えられる。どのような過程を経て生じたか考察せよ。
問4 下線部(c)についてどのような適応進化によって生じたと考えられるか述べよ。
II.乳糖(ラクトース)は,乳に含まれる二糖で,小腸上皮細胞に発現する乳糖分解酵素(ラクターゼ)によって分解される。多くの哺乳類では,離乳後にラクターゼ遺伝子(LCT遺伝子)の発現が低下するが,ヒトの中には,成人になってもラクターゼの活性が高いままの人がいる。そこで,以下の実験を行い,その違いをゲノムの変化で説明できるか検討した。
実験1:ラクターゼ活性の測定 成人の被験者300人について,乳糖を摂取した後の血糖値の上昇量から,ラクターゼの活性を求め,活性にしたがって8群に分けた。最も活性が低い群が1,最も高い群が8である。
実験2:被験者のDNA配列の解析 被験者の同意を得たうえで,LCT遺伝子のプロモーターと転写調節領域(以下,プロモーター・調節領域)のDNA配列を解析した。その結果,LCT遺伝子の翻訳開始点から5′側へ数えて1310番目(以下,−1310と記す)の塩基に多型(CまたはT,以下,−1310C および −1310T とする)を見つけた。
実験3:−1310の遺伝子型とラクターゼ活性の関係 実験1の被験者300人について,−1310の遺伝子型とラクターゼ活性の群の関係を調べた。その結果を表1に示す。CC,CT,TT は遺伝子型を表している。
表1
| ラクターゼ活性(群) | CC(人) | CT(人) | TT(人) |
|---|---|---|---|
| 1 | 4 | 0 | 0 |
| 2 | 14 | 2 | 0 |
| 3 | 30 | 8 | 1 |
| 4 | 41 | 21 | 3 |
| 5 | 34 | 28 | 7 |
| 6 | 17 | 25 | 10 |
| 7 | 5 | 18 | 13 |
| 8 | 0 | 6 | 13 |
実験4:−1310C または −1310T を含むプロモーター・調節領域の活性測定 −1310C または −1310T を含むプロモーター・調節領域(−2000 から −1)を,ルシフェラーゼの遺伝子の前に組み込んだプラスミドを作製した。ルシフェラーゼは,ルシフェリンという基質を酸化させ,光を放出する化学反応を触媒する酵素である。一定のルシフェリンをルシフェラーゼ溶液に添加した時の発光量を測定することで,ルシフェラーゼの相対的な量を知ることができる。LCT遺伝子が発現している細胞に,作製したプラスミドが同じ量になるよう導入し,一定時間培養した後に細胞を回収し破砕してからルシフェリンを加え発光量を測定した(表2)。プロモーター・調節領域を組み込んでいないプラスミドを用いた時(表2,N)の発光量を1として,相対値を算出した。
表2
| プラスミド | −1310C | −1310T | N |
|---|---|---|---|
| 発光量(相対値) | 2.0 | 6.0 | 1.0 |
実験5:牛乳の摂取量と −1310の遺伝子型との関係 実験1とは別の成人の被験者70人(−1310の遺伝子型が CC:30人,CT:25人,TT:15人)について,1日あたりの牛乳の摂取量を調べ,遺伝子型ごとにその平均値を算出した。その結果を表3に示す。
表3
| 遺伝子型 | 牛乳の摂取量(mL/日)の平均値 |
|---|---|
| CC | 85 |
| CT | 190 |
| TT | 260 |
問5 実験3の結果から,被験者集団の遺伝子プールで −1310 が T である割合は何%か。四捨五入して整数で答えよ。
問6 実験4の下線部で,LCT遺伝子を発現している細胞を用いる理由を述べよ。
問7 実験5から −1310T をもつ人は,−1310C をもつ人と比べて牛乳の摂取量が多くなる傾向があることがわかった。その理由を一連の実験結果から考察せよ。
▶ 大問2 の答えと解説を見る
大問2 遺伝的変異(嗅覚受容体・乳糖分解酵素) の答えと解説
問1
ア 突然変異イ 嗅上皮ウ Gタンパク質
- 遺伝する変異は,DNAの塩基配列の変化=突然変異によって生じる。
- 嗅細胞があるのは鼻腔の奥の嗅上皮。嗅覚受容体は,Gタンパク質と共役する7回膜貫通型の受容体。
- 知識問題。
問2
紫外線(放射線,化学物質などでもよい)
- DNAに傷をつけ,突然変異の発生率を高める環境因子には,紫外線・放射線・化学物質(発がん物質)などがある。
問3
ある祖先遺伝子が重複して同じ遺伝子が複数コピーになり,それぞれのコピーに突然変異が蓄積して,少しずつ異なる塩基配列(においを受容する特異性)をもつ多種類の遺伝子になった。
- ポイントは2段階:①遺伝子(を含む領域)の重複でコピーが増える,②コピーのうちの1つが元の働きを保てば,他のコピーに突然変異が入っても生存に不利になりにくく,変異が蓄積して別の分子を受容できる遺伝子に変わる。
- アミノ酸配列・塩基配列に類似性があるのは,もとが共通の遺伝子だからである。
問4
種ごとに,においを手がかりにする程度(食物の探し方・生息環境)が異なり,においの識別が生存に有利な種では,嗅覚受容体遺伝子の重複・変異を起こした個体が自然選択で残って数や種類が増えた。一方,嗅覚への依存が小さい種では,遺伝子が機能を失い減少した。
- 食物や生息環境が種ごとに異なるので,識別が必要なにおいの種類も異なる。
- においの識別が生存・繁殖に有利な種では,嗅覚受容体遺伝子が増えた個体が自然選択を受けて集団に広がる。必要性が小さい種では,遺伝子の機能が失われても不利にならず,数が減る。
- 知識・考察問題(解答は一例)。
問5
34%
- 表1の合計:CC=4+14+30+41+34+17+5+0=145人,CT=0+2+8+21+28+25+18+6=108人,TT=0+0+1+3+7+10+13+13=47人(計300人)。
- T遺伝子の数=CT 108 + TT 47×2 = 202。全遺伝子数=300×2=600。
- $\dfrac{202}{600}\times100=33.7\ldots\to$ 34%。
問6
プロモーター・調節領域に結合して転写を調節する転写調節因子は,その遺伝子を発現している細胞にあるから。発現していない細胞では,転写調節因子がなく,領域の活性(発光量)を比べられないため。
- プロモーター・調節領域の活性は,それに結合する転写調節因子(と RNAポリメラーゼ)が細胞内にあってはじめて現れる。
- 細胞の種類によって,発現している転写調節因子が異なる。LCT遺伝子を発現している細胞なら,その遺伝子の調節に必要な因子がそろっている。
問7
−1310Tのプロモーター・調節領域は活性が高く(実験4),LCT遺伝子の発現量が多いため,ラクターゼ活性が高く(実験3:Tをもつ人は活性の高い群に多い),成人でも乳糖を分解できて,牛乳を多く摂取してもつらくならないから。
- 実験4:−1310Tを含む領域は,−1310Cより発光量が大きい(6.0>2.0)→ T型のほうが転写活性が高く,LCT遺伝子の発現が多い。
- 実験3:Tをもつ人(TT・CT)は,ラクターゼ活性の高い群に偏っている。CCは低い群に多い。
- → Tをもつ人は成人でも乳糖を分解でき,牛乳を飲みやすい。そのため摂取量が多くなる。
類題 大問3 植物の生殖と自家不和合性
植物の生殖に関する各問いに答えよ。
I.多くの被子植物では,おしべの葯の中で花粉母細胞が減数分裂を行い,花粉四分子と呼ばれる未熟な花粉の集まりを作る。その後,花粉四分子のそれぞれが体細胞分裂を行い,大きさの異なる2個の細胞ができ,成熟した花粉となっていく。めしべの胚珠内では胚のう母細胞の減数分裂によって形成された胚のう細胞が,連続した3回のA分裂を経て,8個の核をもつ胚のうを形成する。花粉はめしべの柱頭につくと発芽して花粉管を胚珠に向かって伸ばす。花粉管は胚のう中のB細胞が分泌する誘引物質に導かれて胚のうに到達する。C細胞は花粉管内で分裂して2個の精細胞となり,そのうちの1個は卵細胞と受精してDとなり,もう1個は中央細胞の2個の極核と融合してE(核相Fn)となる。
一方,コケ植物では,精子が水中を泳いで卵に達して受精する。
問1 文章中のA〜Fに入る適切な語句または数字を答えよ。
問2 種子植物とコケ植物はともに陸上植物であるが,種子植物の方がより陸上生活に適している。その理由をそれぞれの生殖のしくみから考察し,述べよ。
II.多くの被子植物では,同じ花の中で自身の花粉がめしべにつくことにより自家受精が起こる。これを避けるしくみに,自家不和合性がある。自家不和合性には S遺伝子が関わっている。S遺伝子には多くの対立遺伝子があり,S1,S2,S3…Sn と表記される。花粉側の特異性を決めるS遺伝子(花粉側のS遺伝子)と,めしべ側の特異性を決めるS遺伝子(めしべ側のS遺伝子)は異なる遺伝子であるが,ともにS遺伝子座上にあり,強く連鎖しており,組換えはほとんど起こらない。自己と非自己の識別はS遺伝子から作られるS因子により行われる。花粉側のS因子とめしべ側のS因子の型が同一であれば自己,異なっていれば非自己と認識される。別の個体の花でもS因子の型が同一であれば自己と識別される。
アブラナ科の植物では,花粉のS因子は花粉をとりまく細胞(2n)によって作られるタンパク質で,作られたタンパク質は花粉表層に移行する。一方,めしべのS因子は柱頭の細胞膜上に存在する受容体である。例えば,花粉のS1因子とめしべのS1因子が結合すると花粉の発芽が抑制される。
ナス科やバラ科の植物では,花粉のS因子は花粉自身が作る酵素で,異なる型のめしべのS因子を分解する。一方,めしべのS因子は花粉管内に移動して,花粉管内のRNAを分解する酵素である。花粉とめしべが同じ型の場合,めしべのS因子は分解されないため,めしべのS因子により花粉管内のRNAが分解され,花粉管の伸長が抑制される。
同じ遺伝子座にある花粉側のS遺伝子とめしべ側のS遺伝子の型は同じであり,また,各対立遺伝子間に優劣はなく,等しくS因子を作るものとして,以下の問いに答えよ。
問3 表1はナス科とアブラナ科のある植物個体についてS遺伝子型やS因子の種類をまとめたものである。空欄①〜⑥に入る適切な遺伝子型または数字をア〜サから選び,記号で答えよ。同じ記号を複数回使ってもよい。
表1
| ナス科 | アブラナ科 | |
|---|---|---|
| めしべの細胞(2n)のS遺伝子型 | S2S6 | S3S5 |
| 花粉の細胞のS遺伝子型 | ① | ② |
| ひとつの花粉の表面に分布する花粉のS因子の種類 | (なし) | ③種類 |
| ひとつの花粉内に存在する花粉のS因子の種類 | ④種類 | (なし) |
| めしべに存在するめしべのS因子の種類 | ⑤種類 | ⑥種類 |
(a) S2(b) S3(c) S5(d) S6(e) S2S6(f) S3S5(g) S2またはS6(h) S3またはS5(i) 1(j) 2(k) 1または2
問4 表2は,ある果樹の品種とそれぞれのS遺伝子型(体細胞)の関係を示している。この果樹はナス科やバラ科と同様に,花粉自身がS因子を作るしくみをもつ。1)〜3)の各問いに答えよ。
表2
| S遺伝子型 | 品種名 | S遺伝子型 | 品種名 |
|---|---|---|---|
| S1S2 | 品種ア,品種オ | S3S5 | 品種エ |
| S1S3 | 品種イ | S2S4 | 品種カ |
| S1S2S5 | 品種ウ | S4S5 | 品種キ |
1) 品種アから採集した花粉を,異なる品種の花のめしべにつけた。その結果,結実しないと考えられる品種を表からすべて選び,答えよ。
2) 品種イの花粉を品種エの花のめしべにつけたところ結実した。このとき,花粉管が伸長する花粉の割合はどれだけか。分数で答え,その理由も述べよ。
3) 品種アの花粉を品種カのめしべにつけた。受精によってできる胚について,S遺伝子型とその比を答えよ。
アブラナ科に属する多くの植物は自家不和合性を示す。アブラナ科のある属の種Zは,すべての個体が自家受精を行うが,その祖先は自家不和合性の性質をもっていたと考えられている。また,種Zは種内でさらに細分化したグループ(系統)に分けられる。種Zと,その近縁種で自家不和合性を示す種YのS遺伝子のDNA配列を比較したところ,種Zについて次の①〜③のことがわかった。
① 種Zの多くの系統では,花粉側のS遺伝子に自家不和合性の機能を欠損させるさまざまなタイプの変異がある。
② 種Zの一部の系統では,花粉側のS遺伝子のDNA配列には変異がなく,種Yと同じ(Y型)である。
③ 種Zのめしべ側のS遺伝子は,すべての系統で機能が欠損している。ほとんどの場合,めしべ側のS遺伝子の一部に欠失が起こっていることが原因である。
種Zと種Yを用いて,交配実験1〜4を行った。
実験1:花粉側のS遺伝子が機能を欠損している種Zの花粉を,S遺伝子型が同じ種Yのめしべにつけた。結果1:花粉管は伸長した。
実験2:花粉側のS遺伝子のDNA配列がY型である種Zの花粉を,S遺伝子型の異なる種Yのめしべにつけた。結果2:花粉管は伸長した。
実験3:花粉側のS遺伝子のDNA配列がY型である種Zの花粉を,S遺伝子型が同じ種Yのめしべにつけた。結果3:花粉管は伸長しなかった。
実験4:花粉側のS遺伝子のDNA配列がY型である種Zの花粉を,めしべ側のS遺伝子の欠失を正常に戻した種Zのめしべ(S遺伝子型は花粉と同じY型)につけた。結果4:花粉管は伸長しなかった。
問5 実験1〜4について,次の1)〜3)に答えよ。
1) 実験1で花粉管が伸長した理由を考察せよ。
2) 実験2で花粉管が伸長した理由を考察せよ。
3) 実験1〜4の結果から導き出せる考察を,次のa〜dよりすべて選び,記号で答えよ。また,選んだ理由を述べよ。
(a) 種Yと種Zの雑種を作ることは不可能である。(b) 花粉側のS遺伝子とめしべ側のS遺伝子の型が一致すれば,異種の個体間でも自家不和合性のしくみが働く。(c) 花粉側のS遺伝子が変異したことで,種Zは自家受精を行う種に進化した。(d) めしべ側のS遺伝子の変異を元に戻すことで,再び自家不和合性をもつ個体にすることが可能である。
▶ 大問3 の答えと解説を見る
大問3 植物の生殖と自家不和合性 の答えと解説
問1
A 核B 助C 雄原D 胚(受精卵)E 胚乳F 3
- 胚のう細胞は,核分裂を3回くり返して 2→4→8 個の核になる(細胞質分裂は伴わない)。
- 卵細胞のそばにある助細胞が花粉管を誘引する。花粉管内の雄原細胞が分裂して2個の精細胞になる。
- 重複受精:精細胞(n)+卵細胞(n)→受精卵(2n)(胚になる)。精細胞(n)+極核(n+n)→胚乳(核相3n)。
- 知識問題。
問2
コケ植物では精子が水中を泳いで卵に達するので受精に水が必要。種子植物は花粉管で精細胞を卵細胞まで運ぶので,水がなくても受精でき,乾燥した陸上でも生殖できる。
- コケ植物:精子には鞭毛があり,雨水・露などの水中を泳いで造卵器の卵に到達する。受精に水が必要。
- 種子植物:花粉が風・虫で運ばれ,柱頭から花粉管を伸ばして精細胞を直接卵細胞に届ける。受精に外部の水が不要。
- 考察問題(解答は一例)。
問3
① キ② ク③ コ④ ケ⑤ コ⑥ コ
- 花粉は減数分裂でできた n の細胞なので,S遺伝子は1つだけ:ナス科は S2 または S6(キ),アブラナ科は S3 または S5(ク)。
- アブラナ科:花粉のS因子は,花粉をとりまく 2n の細胞が作るので,S3・S5 の両方の因子が花粉の表面にある → ③ 2種類(コ)。
- ナス科:花粉のS因子は花粉自身(n)が作るので,1つの花粉には1種類 → ④ 1種類(ケ)。
- めしべのS因子は,めしべの細胞(2n)がもつ2つのS遺伝子から,どちらも等しく作られる → ⑤⑥ 2種類(コ)。
問4 1)
品種ウ,品種オ
- 花粉のS因子は,花粉自身がもつ S1 または S2 のどちらか(1:1)。花粉管は,めしべに同じS因子がなければ伸びる。
- めしべに S1 と S2 の両方をもつ品種だけが,どちらの花粉も止める。S1S2 の品種オ,S1S2S5(三倍体)の品種ウが該当する。
問4 2)
1/2。S1の花粉は伸長し,S3の花粉はめしべのS3と同じため伸長しない。
- 品種イ(S1S3)の花粉は S1 : S3 = 1 : 1。品種エのめしべ(S3S5)に S3 があるので,S3 の花粉の花粉管は伸びが抑制される。
- S1 の花粉は,めしべに S1 がないので伸長して受精する。よって伸長するのは 1/2。
問4 3)
S1S2 : S1S4 = 1 : 1
- 品種アの花粉は S1 または S2。品種カ(S2S4)のめしべには S2 があるので,S2 の花粉の花粉管は伸びない。S1 の花粉だけが受精する。
- 卵細胞は S2 または S4(1:1)。よって胚は S1S2 : S1S4 = 1 : 1。
問5 1)
花粉側のS遺伝子が機能を欠損していて花粉のS因子ができないため,めしべのS因子と同じ型でも,花粉が自己と識別されなかったから。
- 自己と認識されるのは,花粉のS因子とめしべのS因子の型が同一のとき。
- 花粉側のS遺伝子が機能しないと,花粉のS因子がない(または働かない)ので,めしべのS因子(型が同じ)があっても自己と識別されず,花粉管は伸長する。
問5 2)
花粉のS因子とめしべのS因子の型が異なり,非自己と識別されるから。
- 花粉側は正常(Y型)で,めしべ側とS遺伝子型が異なる。型が異なれば非自己と認識されるので,花粉管の伸長は抑制されない。
- 種が違っても,S因子の型の一致・不一致で判定が決まることを示す。
問5 3)
b,d
- b:実験3と実験4で,型が一致すると花粉管が伸長しなかった(種Zの花粉と種Yのめしべの組合せでも,Yの型に直した種Zのめしべの組合せでも)。
- d:実験4で,欠失を正常に戻した種Zのめしべでは,Y型の花粉の花粉管が伸長しなかった。
- a:実験1・2・4で花粉管が伸長する組合せがあり,雑種ができないという根拠はない。
- c:③より,めしべ側の機能欠損はすべての系統に共通。花粉側の変異は多くの系統にあるが(①),実験で示されているのは「めしべ側を直すと自家不和合性がもどる」ことで,花粉側の変異が自家受精への進化の原因だとは導けない。
※ 類題は、本番の解き方の骨格は残しつつ、題材・数値・条件を変えて作っています(大問1は鉄を亜鉛に、制限酵素の組合せと配列を変更。大問2は苦味を嗅覚に、甘味の多型を乳糖分解酵素に。大問3はS遺伝子型と品種の組合せを変更)。配列・度数・遺伝の組合せは、pythonで確かめています。
30秒 得点診断
本番の過去問、またはそっくり類題セットを60分で解いた結果を選んでください。次にやるべきことを表示します。
保護者の方へ:慈恵医大の生物で知っておきたい3つのこと
① 「実験を読んで説明する」問題が中心
語句だけでなく、実験結果を根拠に理由を述べる記述が多く出ます。知識を暗記するだけでなく、「結果→だから→結論」を書く練習が点につながります。② 配列・遺伝の問いは「手順」で取れる
塩基配列、制限酵素、遺伝子型の組合せは、書き出して全列挙すれば確実に取れます。ここで落とさないことが合格ラインの土台になります。③ 秋からは「答案を見てもらう」
記述の書き方は、独学では直しにくい部分です。どこで点を失ったか、第三者の目で見ると最短で伸びます。よくある質問
Q. 東京慈恵会医科大学 医学部の生物2026年度は、どの順番で解くのがよいですか?
TMPSのおすすめは、大問1(遺伝子の発現調節・制限酵素)に22分、大問2(変異と味覚)に18分、大問3(植物の生殖)に20分の、生物60分の配分です。本番は理科2科目で120分なので、生物に60分を使う想定です。大問ごとに独立しているので、得意な大問から入って構いません。
Q. 問題文が載っていなくても、どんな問題か分かりますか?
分かります。著作権に配慮して問題本文・図は掲載していませんが、各大問の最初に「どういう問題か」として、設定・何を答えるか・答える形(語句・記号・図への書き込み・記述)をTMPSの言葉で説明しています。
Q. 答えは、どうやって確かめていますか?
配列・制限酵素の切断と連結、電気泳動のバンド、遺伝子頻度、S遺伝子の組合せの全列挙は、pythonで確かめています。一方、用語・知識問題や、考察の記述(理由づけ)はスクリプトでは確かめられないので、ページ内に「要確認」と明記し、断定していません。
Q. 記述(考察)問題は、どう書けばいいですか?
「何がどうなるから、こうなる」を1文で言い切る形が基本です。このページには、実験結果のどこを根拠にするかまで含めた答案例を載せています。
Q. そっくり類題セットとは何ですか?
2026年度と同じ3大問(問1〜7、問1〜7、問1〜5)の構成で、題材・数値・設定を変えたTMPSオリジナル問題です。全問の答え・解説をこのページに掲載し、本番形式の問題冊子PDFも無料で配布しています。
Q. 解説に誤りを見つけたらどうすればいいですか?
公式LINEからお知らせください。確認のうえ修正し、更新日を記載します。
安心安全・継続更新システム
問題等で誤りを発見された場合、修正しますので、TMPS医学館までLINEを下さい。
受験生・指導者の皆様からのご指摘を真摯に受け止め、最も信頼できる過去問解説・類題ライブラリーとして随時アップデートいたします。
🔥 次に読むならこちら
慈恵医大の生物を、
あなたの答案で攻略する
「どこで時間を失ったか」「記述でどこが減点されそうか」を、Sora先生があなたの答案から直接診断します。